文献阅读笔记2 | IL-1β 的非经典分泌途径
一句话总结:
这篇 1990 年的论文发现,缺乏信号肽的 IL-1β 不经过经典的 ER–Golgi 途径,而是通过一种新型的、应激增强的分泌途径从激活的人单核细胞中释放;部分 IL-1β 存在于抗蛋白酶消化的细胞内囊泡中,提示囊泡可能参与其加工和分泌。
文献信息
| 项目 | 内容 |
|---|---|
| 标题 | A novel secretory pathway for interleukin-1β, a protein lacking a signal sequence |
| 作者 | Anna Rubartelli, Federico Cozzolino, Marina Talio, Roberto Sitia |
| 单位 | Istituto Nazionale per la Ricerca sul Cancro, Genova; University of Firenze, Italy |
| 期刊 | EMBO Journal |
| 年份 | 1990 |
| 关键词 | interleukin-1; secretion; signal sequence; endoplasmic reticulum; translocation |
研究背景
大多数分泌蛋白在 N 端带有 13–30 个疏水氨基酸组成的信号肽,引导其共翻译地进入内质网(ER),随后经高尔基体运输到分泌囊泡,最终释放到胞外。这是经典的 ER–Golgi 分泌途径。
但白细胞介素-1(IL-1)是一个例外。IL-1α 和 IL-1β 是激活单核细胞产生的重要炎症细胞因子,它们没有典型的信号肽,免疫电镜和亚细胞分级也未能证明它们存在于 ER 或高尔基体中。那么,IL-1β 到底是如何被分泌的?这篇论文就是要回答这个问题。
主要方法
- 细胞:LPS 激活的人外周血单核细胞;U937 细胞系(可产生 IL-1β 但不分泌)。
- 代谢标记:用 [³⁵S] 甲硫氨酸或 [³⁵S] 半胱氨酸进行脉冲-追踪标记。
- 免疫沉淀:用抗 IL-1α、抗 IL-1β、抗 IL-6、抗 TNFα 等抗体沉淀目标蛋白。
- SDS-PAGE 与放射自显影:分析蛋白迁移和加工。
- 药物处理:BFA、monensin、methylamine、DNP、CCCP、A23187、环己酰亚胺、tunicamycin 等。
- 亚细胞分级:差速离心获得胞质和颗粒组分,再用胰蛋白酶消化检测膜保护。
- 细胞活力检测:台盼蓝排斥和 LDH 活性测定,排除细胞死亡导致的蛋白释放。
主要结果
1. IL-1β 被选择性分泌,而 IL-1α 不分泌
LPS 激活的单核细胞中,IL-1α 和 IL-1β 都在胞内合成,主要以 33 kDa 的 pro-IL-1 形式存在。但培养上清中只能检测到 17 kDa 的成熟 IL-1β,没有 IL-1α,也没有 pro-IL-1β。这说明 IL-1β 的分泌是选择性的,且伴随加工。
2. 分泌不是细胞死亡导致的
- 上清中没有胞内蛋白和 LDH;
- 冻融杀死细胞后,只释放未成熟的 33/29 kDa pro-IL-1β,不释放 17 kDa 成熟形式;
- 说明 17 kDa IL-1β 的分泌需要活细胞。
3. 不依赖经典 ER–Golgi 途径
- BFA 和 monensin 能阻断 IL-6 和 TNFα 的分泌,却不抑制 IL-1β,反而增加其分泌;
- IL-1β 没有被 N-糖基化(tunicamycin 处理不影响其迁移),也不在 ER 中;
- 这些证据表明 IL-1β 不进入 ER,走的是非经典途径。
4. 分泌受多种条件调节
| 条件 | 对 IL-1β 分泌的影响 |
|---|---|
| Methylamine | 抑制 |
| 18°C | 抑制 |
| 无血清培养基 | 抑制 |
| 42°C | 增加 |
| A23187(钙离子载体) | 增加 |
| BFA | 增加 |
| Monensin | 增加 |
| DNP(解偶联剂) | 增加 |
| CCCP(解偶联剂) | 增加 |
| 环己酰亚胺 | 不抑制(不需要新蛋白合成) |
Methylamine 也抑制 p46 的分泌,而 DNP 增加 IL-1β 和 p46 的分泌,提示两者可能共用同一分泌途径。
5. 部分 IL-1β 存在于抗胰蛋白酶的囊泡中
亚细胞分级显示,IL-1β 同时存在于胞质和颗粒组分中。颗粒组分中的 IL-1β 大部分不被胰蛋白酶消化,说明它被膜保护;加去垢剂 NP-40 后变得可被消化。IL-1α 的保护程度较低。
在 U937 细胞中,IL-1β 只存在于胞质,颗粒组分和上清中都没有,且全部可被蛋白酶消化。这提示含 IL-1β 的囊泡是分泌途径的一部分。
6. 加工可能与分泌偶联
颗粒组分在 37°C 孵育后,17/33 kDa 比例升高,提示 33→17 kDa 的加工可能发生在囊泡中。但在完整细胞的 NP-40 裂解物中检测不到 17 kDa,说明加工可能发生在分泌过程中或囊泡释放时。
结论与意义
- IL-1β 通过一种非经典、应激增强的分泌途径释放,不依赖 ER–Golgi。
- 部分 IL-1β 存在于细胞内囊泡中,这些囊泡可能参与其加工和分泌。
- 分泌可被 methylamine、低温、无血清抑制,被 42°C、钙离子载体、BFA、monensin、DNP、CCCP 增加。
- 作者推测该途径可能涉及内体循环、自噬、MDR 转运蛋白或热休克蛋白,但具体机制尚不清楚。
- 这种非经典途径可能也用于其他无信号肽的胞外蛋白,如 bFGF、PD-ECGF、ADF、factor XIIIa 和酵母 a-factor。
我的思考
这篇论文发现部分 IL-1β 在囊泡内被加工,但未鉴定囊泡身份。我的一个不成熟的思路是:如果 IL-1β 在囊泡内被加工,那么加工它的酶也必然存在于同一囊泡中。因此,是不是可以通过鉴定加工酶的身份,反向推断囊泡的来源?至于加工酶的身份,有没有可能可以通过其他白细胞介素进行推测和探明?
后续研究表明,IL-1β 的主要加工酶是 caspase-1,而 caspase-1 本身定位于内溶酶体/分泌性溶酶体相关区域。这些囊泡通常带有 cathepsin D 和 LAMP-1 等溶酶体标志物。因此,如果 IL-1β 囊泡内存在活性 caspase-1,就强烈提示这些囊泡来源于内溶酶体系统,而不是自噬体等其他膜结构。
这一逻辑也能帮助区分不同囊泡来源:自噬体虽然也包裹细胞质成分,但其经典命运是与溶酶体融合降解,且后续研究表明自噬对 IL-1β 分泌可能起抑制作用,而非促进。因此,加工酶的身份可以作为“分子指纹”,用来反推分泌囊泡的细胞器来源。
仅为一点想法,可能不切实际。
专业词汇表
| 单词 | 音标 | 释义 | 生化医学专业含义 | 解释 |
|---|---|---|---|---|
| interleukin | /ˌɪntəˈluːkɪn/ | 白细胞介素 | 一类由白细胞分泌的细胞因子,调节免疫和炎症反应 | IL-1、IL-6 等都属于白细胞介素 |
| cytokine | /ˈsaɪtəkaɪn/ | 细胞因子 | 细胞分泌的小分子蛋白,介导细胞间信号传递 | 包括白细胞介素、干扰素、肿瘤坏死因子等 |
| necrosis | /neˈkrəʊsɪs/ | 坏死 | 细胞被动死亡,常伴随膜破裂和内容物释放 | 与细胞凋亡不同 |
| tumor necrosis factor | /ˈtjuːmə neˈkrəʊsɪs ˈfæktə/ | 肿瘤坏死因子 | 一种促炎细胞因子,可诱导肿瘤细胞坏死 | 缩写 TNF,有 TNFα 和 TNFβ |
| glycosylation | /ˌɡlaɪkəsɪˈleɪʃn/ | 糖基化 | 蛋白质或脂质上连接糖链的修饰过程 | N-连接糖基化发生在 Asn 残基上,是 ER 中常见修饰 |
| apparatus | /ˌæpəˈreɪtəs/ | 器官、装置 | 此处指高尔基体(Golgi apparatus) | 细胞内负责蛋白质加工和分选的细胞器 |
| egress | /ˈiːɡres/ | 外出、出现 | 指蛋白质从 ER 离开,进入高尔基体 | BFA 可阻止 ER 出口 |
| lipopolysaccharide | /ˌlɪpəʊˌpɒliˈsækəraɪd/ | 脂多糖 | 革兰氏阴性菌细胞壁成分,可激活免疫细胞 | 缩写 LPS,常用于激活单核细胞 |
| signal sequence | /ˈsɪɡnəl ˈsiːkwəns/ | 信号序列 | N 端疏水氨基酸序列,引导蛋白进入 ER | 也称 leader sequence 或 signal peptide |
| endoplasmic reticulum | /ˌendəʊˈplæzmɪk rɪˈtɪkjʊləm/ | 内质网 | 蛋白质合成、折叠和糖基化的细胞器 | 缩写 ER |
| Golgi apparatus | /ˈɡɒldʒi ˌæpəˈreɪtəs/ | 高尔基体 | 蛋白质加工、分选和包装的细胞器 | 经典分泌途径的中间站 |
| brefeldin A | /ˈbrefeldɪn eɪ/ | 布雷菲德菌素 A | 抑制 ER 到高尔基体的运输 | 缩写 BFA |
| monensin | /məˈnensɪn/ | 莫能菌素 | 阻断高尔基体内的蛋白质运输 | 一种离子载体抗生素 |
| methylamine | /ˈmeθɪləmiːn/ | 甲胺 | 弱碱,可抑制内吞和溶酶体功能 | 本论文中抑制 IL-1β 分泌 |
| trypsin | /ˈtrɪpsɪn/ | 胰蛋白酶 | 丝氨酸蛋白酶,用于消化蛋白质 | 本论文中用于检测囊泡保护 |
| vesicle | /ˈvesɪkl/ | 囊泡 | 细胞内由膜包裹的小泡 | 参与运输、分泌、自噬等 |
| cytosol | /ˈsaɪtəsɒl/ | 胞质溶胶 | 细胞质中除细胞器外的可溶部分 | 蛋白质合成和代谢的主要场所 |
| particulate fraction | /pɑːˈtɪkjʊlət ˈfrækʃn/ | 颗粒组分 | 离心后得到的膜性细胞器沉淀 | 与胞质组分相对 |
| immunoprecipitation | /ˌɪmjʊnəʊprɪˌsɪpɪˈteɪʃn/ | 免疫沉淀 | 用抗体特异性沉淀目标蛋白 | 常与 SDS-PAGE 联用 |
| SDS-PAGE | /ˌes diː es peɪdʒ/ | SDS-聚丙烯酰胺凝胶电泳 | 分离蛋白质的常用电泳方法 | 根据分子量分离 |
| pulse-chase | /pʌls tʃeɪs/ | 脉冲-追踪 | 短时间标记后追踪蛋白命运 | 研究蛋白质合成、加工和分泌 |
| LDH | /ˌel diː ˈeɪtʃ/ | 乳酸脱氢酶 | 胞质酶,细胞死亡时释放 | 用于检测细胞裂解 |
| tunicamycin | /ˌtjuːnɪkəˈmaɪsɪn/ | 衣霉素 | 抑制 N-连接糖基化 | 缩写 Tm |
| cycloheximide | /ˌsaɪkləʊˈheksɪmaɪd/ | 环己酰亚胺 | 抑制蛋白质合成 | 缩写 CEX |
| DNP | /ˌdiː en ˈpiː/ | 二硝基苯酚 | 氧化磷酸化解偶联剂 | 降低 ATP 水平 |
| CCCP | /ˌsiː siː siː ˈpiː/ | 羰基氰氯苯腙 | 解偶联剂,抑制氧化磷酸化 | 降低 ATP 水平 |
| A23187 | /eɪ ˌtuː θriː wʌn eɪti sevən/ | 钙离子载体 | 增加胞内钙浓度 | 本论文中增加 IL-1β 分泌 |
| heat shock protein | /hiːt ʃɒk ˈprəʊtiːn/ | 热休克蛋白 | 应激条件下表达的分子伴侣 | 缩写 hsp,如 hsp70 |
| autophagy | /ɔːˈtɒfədʒi/ | 自噬 | 细胞降解自身成分的过程 | 与 IL-1β 囊泡来源可能相关 |
| endocytosis | /ˌendəʊsaɪˈtəʊsɪs/ | 内吞 | 细胞摄取胞外物质的过程 | methylamine 可抑制内吞 |
| MDR | /ˌem diː ˈɑː/ | 多药耐药 | 外排转运蛋白,可运输多种底物 | 酵母 a-factor 分泌需要 STE6,与 MDR 同源 |
| bFGF | /ˌbiː ef dʒiː ˈef/ | 碱性成纤维细胞生长因子 | 无信号肽的胞外生长因子 | 可能也走非经典分泌途径 |
| PD-ECGF | /ˌpiː diː iː siː dʒiː ˈef/ | 血小板衍生内皮细胞生长因子 | 无信号肽的胞外蛋白 | 可能共用非经典途径 |
| ADF | /ˌeɪ diː ˈef/ | 成人 T 细胞白血病衍生因子 | 硫氧还蛋白样分子,无信号肽 | 由白血病 T 细胞释放 |
| factor XIIIa | /ˈfæktə ˈθɜːtiːn eɪ/ | 凝血因子 XIIIa | 参与血液凝固,无信号肽 | 可能通过非经典途径分泌 |
| translocation | /ˌtrænzləˈkeɪʃn/ | 易位 | 蛋白质穿过膜的过程 | 经典途径中进入 ER |
| co-translational | /ˌkəʊ trænzˈleɪʃənl/ | 共翻译的 | 蛋白质合成同时进行易位 | 经典分泌途径的特点 |
| post-translational | /ˌpəʊst trænzˈleɪʃənl/ | 翻译后的 | 蛋白质合成完成后再易位 | 酵母和线粒体中的方式 |
| reducing milieu | /rɪˈdjuːsɪŋ miːˈljɜː/ | 还原环境 | 含自由巯基,防止二硫键形成 | ER 是氧化环境,可能对 IL-1β 有害 |
| autocrine | /ˈɔːtəkrɪn/ | 自分泌 | 细胞分泌因子作用于自身 | 与受体共定位可能导致异常激活 |
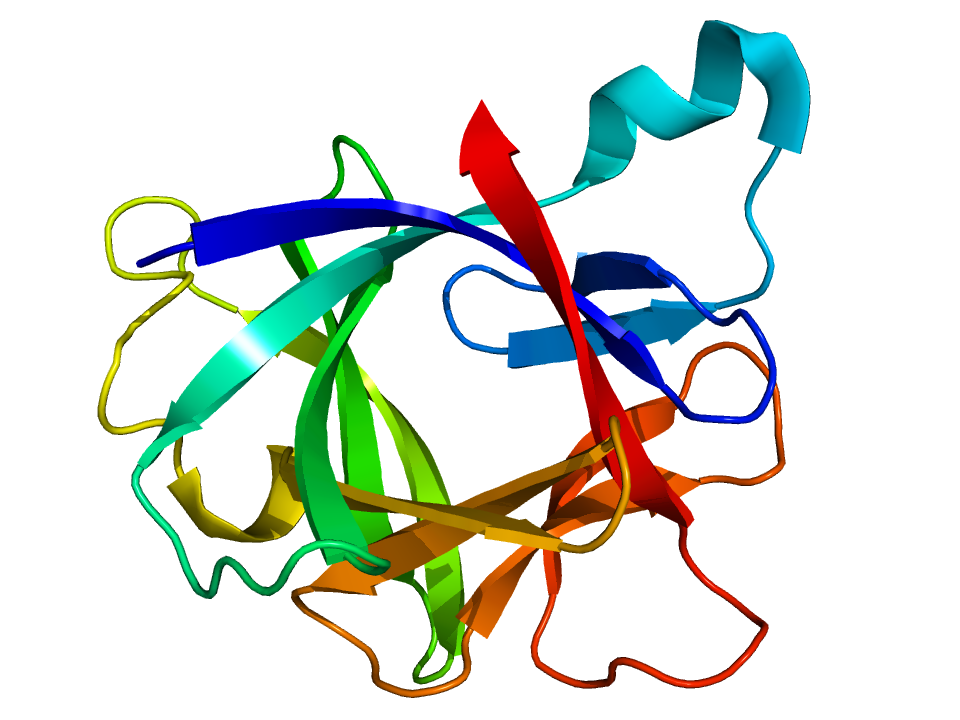
图片来自网络,展示IL-1β的结构。