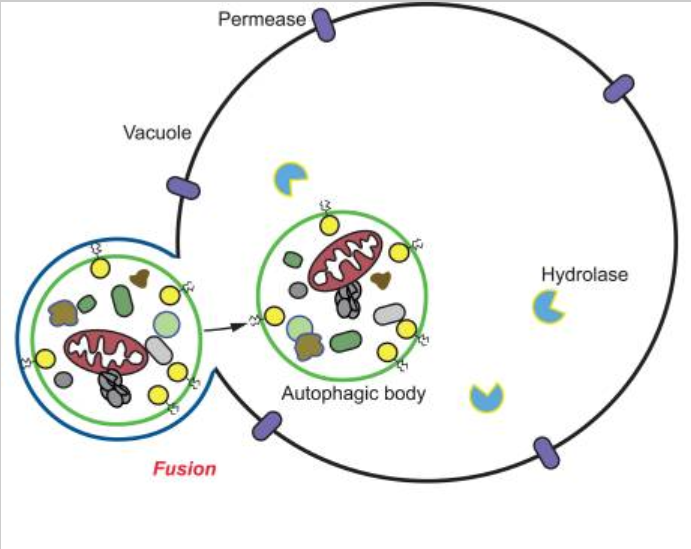
文献阅读笔记 | 酵母自噬缺陷突变体的分离与鉴定
概述:
这篇 1993 年的经典论文首次在酿酒酵母中通过遗传学筛选分离到自噬缺陷突变体,鉴定出 15 个互补群(APG1–APG15),证明自噬体途径是饥饿条件下液泡内蛋白质降解和细胞存活所必需的,为后来 ATG 基因的发现奠定了基础。
文献信息
| 项目 | 内容 |
|---|---|
| 标题 | Isolation and characterization of autophagy-defective mutants of Saccharomyces cerevisiae |
| 作者 | Miki Tsukada, Yoshinori Ohsumi |
| 单位 | Department of Biology, College of Arts and Sciences, University of Tokyo |
| 期刊 | FEBS Letters |
| 年份 | 1993 |
| 关键词 | Yeast; Autophagy; Autophagic body; Vacuole; Protein degradation |
研究背景
自噬是细胞在营养缺乏等逆境条件下降解自身细胞质成分的过程。在哺乳动物细胞中,自噬主要通过电子显微镜观察,但其分子机制长期不清楚。酵母 Saccharomyces cerevisiae 提供了一个理想的遗传学模型:
- 缺乏液泡蛋白酶的酵母细胞在营养缺乏时,液泡内会积累球形膜结构,称为 自噬体(autophagic bodies, ABs)。
- ABs 非选择性地包裹细胞质成分,进入液泡后被降解。
- 作者推测,自噬涉及自噬体形成、细胞质隔离、与液泡膜融合等多个膜事件,必然需要多个基因参与。
因此,他们试图通过遗传学筛选分离自噬缺陷突变体,从而在分子水平研究自噬机制。
筛选策略
作者使用了两种互补的筛选方法:
| 步骤 | 方法 | 目的 |
|---|---|---|
| 第一种方法 | 使用多重蛋白酶缺陷株 BJ3505,在碳饥饿(SG)下用光学显微镜观察液泡内是否积累 ABs | 直接根据形态学筛选自噬缺陷突变体 |
| 第二种方法 | 用 EMS 诱变野生型 X2180-1A,在缺氮平板 SD(-N) 上加 phloxine B,筛选快速变红的菌落;再在含 PMSF 的 SD(-N) 液体培养基中显微观察 ABs | 以“氮饥饿下活力丧失”为初筛,再确认自噬缺陷 |
其中,phloxine B 是一种染料,死细胞会被染成红色,因此红色菌落代表在氮饥饿下快速死亡的候选突变体。
PMSF 是丝氨酸蛋白酶抑制剂,可抑制液泡蛋白酶,使野生型细胞也能积累 ABs,便于观察。
主要结果
1. 第一个自噬缺陷突变体 apg1
- 从蛋白酶缺陷株 BJ3505 中直接筛选到一株不能在液泡中积累 ABs 的突变体,命名为 apg1(autophagy)。
- apg1 突变体在氮饥饿下:
- 不积累 ABs;
- 液泡内蛋白质降解严重缺陷;
- 比野生型更快失去活力。
2. 大规模筛选更多 apg 突变体
- 用 EMS 诱变 X2180-1A,初筛约 38,000 个诱变细胞,得到约 2,700 个红色菌落。
- 重复形态学筛选至少 3 次后,获得 99 个 apg 突变体。
- 初筛候选者中约 4% 表现为 Apg⁻ 表型。
3. 遗传分析与互补群
- 99 个突变体与野生型 X2180-1B 杂交:
- 12 个不育,排除;
- 87 个二倍体均表现为 Apg⁺,说明突变均为 隐性;
- 其中 12 个在四分体分析中不符合 2:2 分离,排除。
- 最终 75 个隐性 apg 突变 加上 apg1-2,归入 15 个互补群。
- 新互补群代表被回交 3 次,命名为 apg2-1 到 apg15-1。
4. apg 突变体的共同表型
| 表型 | 结果 |
|---|---|
| 正常生长 | 在 YEPD 及非发酵碳源上生长良好 |
| 有丝分裂细胞周期 | 无明显缺陷(无 ts/cs 表型) |
| 氮饥饿下活力 | 2 天后开始死亡,5 天存活率 <20% |
| 产孢 | 纯合二倍体均不产孢 |
| 多种饥饿下 AB 积累 | 氮、碳、单氨基酸饥饿下均不积累 AB |
| 总蛋白质降解 | 低于野生型的 36% |
| PMSF 敏感型降解 | 极低 |
| 液泡酸化 | 正常 |
| 内吞途径 | 正常 |
| PrA 运输 | 正常 |
这些结果说明:apg 突变体的液泡基础功能正常,自噬缺陷不是由液泡本身功能异常引起的,而是自噬过程本身受阻。
结论与意义
- 自噬是饥饿条件下液泡内蛋白质降解的主要途径。
- 至少 15 个 APG 基因参与酵母自噬。
- 缺陷发生在 ABs 出现在液泡之前的步骤,可能涉及:
- 营养饥饿信号转导;
- 自噬体膜形成;
- 细胞质隔离;
- 自噬体运输;
- 与液泡膜识别和融合。
- 自噬对氮饥饿下的细胞存活和产孢至关重要。
- 该研究建立了酵母自噬的遗传学筛选体系,为后来 ATG 基因的发现和自噬分子机制研究奠定了基础。
注: 后来 APG 基因统一改名为 ATG 基因,例如 APG1 即 ATG1。
我的思考
这篇论文的实验设计非常有想法,给人启发:
先用一个明确的生理表型——氮饥饿下快速失去活力——作为初筛,再用显微镜确认自噬体积累缺陷,既可以先快速筛选出潜在菌群,又通过二次筛选提高精确性。
通过互补分析发现 15 个基因参与自噬,说明自噬不是由少数几个基因控制,而是一个复杂、高度调控的过程。而且,所有 apg 突变体的液泡酸化、内吞和 PrA 运输都正常,这排除了“液泡本身坏了”的可能性,把缺陷精准定位在自噬途径本身。不过也有可能因为筛选过程对液泡异常细胞的排除导致一些突变体的遗漏,未来也许可以通过其他手段避免。
其他可扩展:
这 15 个 APG 基因分别对应自噬的哪个步骤?哪些参与信号转导,哪些参与膜运输?
后来 ATG 基因的研究已基本回答这些问题,可以上网查阅了解。
原文信息
- Tsukada, M., & Ohsumi, Y. (1993). Isolation and characterization of autophagy-defective mutants of Saccharomyces cerevisiae. FEBS Letters, 333(1-2), 169–174.
封面图片来自其他相关论文