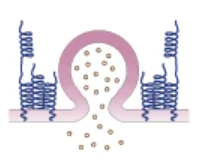
文献阅读笔记3 | SNARE 蛋白编码的膜融合区室特异性
一句话总结:
这篇 2000 年的 Nature 论文把酵母基因组里全部 11 个候选 v-SNARE 与 3 个分别标记高尔基、液泡、质膜的 t-SNARE 复合物两两配对,做完了全部 33 个组合的脂质体融合实验;结果 33 个里只有 4 个已知的生理配对和 2 个额外组合能融合,说明细胞内的膜流地图在很大程度上就"写"在 SNARE 蛋白自身的物理化学性质里——把 SNARE 从细胞里拿出来,特异性依然成立。
文献信息
| 项目 | 内容 |
|---|---|
| 标题 | Compartmental specificity of cellular membrane fusion encoded in SNARE proteins |
| 作者 | James A. McNew*, Francesco Parlati, Ryouichi Fukuda*, Robert J. Johnston, Keren Paz, Fabienne Paumet, Thomas H. Söllner & James E. Rothman(* 同等贡献) |
| 单位 | Cellular Biochemistry and Biophysics Program, Memorial Sloan-Kettering Cancer Center, New York, USA |
| 期刊 | Nature |
| 卷期页码 | 407, 153–159 |
| 年份 | 2000(5 月 30 日投稿,7 月 18 日接收,9 月 14 日发表) |
| 关键词 | SNARE; v-SNARE; t-SNARE; membrane fusion; compartmental specificity; SNAREpin; liposome reconstitution; Saccharomyces cerevisiae |
研究背景
真核细胞的细胞质被膜分隔成许多区室,物质靠囊泡在区室之间穿梭:囊泡从供体区室出芽,带着特定的"货物"(cargo),最终只与指定的靶膜融合。这个"只跟对的人融合"的性质,就是区室特异性(compartmental specificity)。如果特异性失效,货物就会被投递到错误的地方——对细胞而言这是灾难性的。
1993 年,Söllner 等发现囊泡膜上的 v-SNARE(vesicle-SNARE)与靶膜上的 t-SNARE(target-SNARE)能够配对,并据此提出 SNARE 假说:v-SNARE 与 t-SNARE 的特异性配对既是囊泡"停靠(docking)“的分子基础,也是启动双层膜融合的机制本身。SNARE 这个名字来自 “SNAP receptor”(SNAP = soluble NSF attachment protein,NSF = N-ethylmaleimide-sensitive factor)。
到 2000 年,这个假说的"前半段"已经被反复验证:
- SNARE 的胞质域能自组装成棒状的 SNARE 复合物(四螺旋束),把囊泡"拴"在靶膜上;
- 把 v-SNARE 和 t-SNARE 分别重建到两个人造脂质体上,两者配对就足以自发触发融合,这种最小装置被称为 SNAREpin;
- 融合的能量来自 SNARE 复合物异常高的稳定性,这份自由能被用来对脂双层"做功”;
- 分离的 SNARE 驱动的融合速度快到可以与细胞内整体的胞吐速率相比;
- 来自 ER–高尔基、液泡同型融合、调节性胞吐等不同通路的 SNARE,都能在脂质体上融合。
于是问题就变成了:既然融合这么"自动",那特异性是不是也自动的?
逻辑上,区室特异性可以来自三个层次:
- 定位(localization):SNARE 靠自身的分选信号待在不同区室,彼此"见不到面";
- 调控(regulation):Rab GTPase、tether(拴系蛋白)、SM 蛋白等调控因子在空间和时间上限制 SNARE 的活性;
- 内在性质(intrinsic property):SNARE 自己"认不认"对方,配对之后能不能在运输的时间尺度内真的把两层膜拉到一起并融合。
前两个层次只有在完整细胞里才读得出来;只有第三个层次可以被"孤立"的蛋白单独检验。这正是本文的实验切口:把 SNARE 从细胞里彻底拿出来,看特异性还在不在。
选择酵母(Saccharomyces cerevisiae)作为材料的理由非常充分:它的基因组测序已经完成,全部 SNARE 都已被注释;ER–高尔基、液泡、质膜这三条通路上"哪一对配哪一对"也已经在功能上被确定。因此可以做一个穷举式的实验,而不是挑几个组合看看。
主要方法
- 蛋白表达与纯化:大肠杆菌(E. coli)表达。Snc1、Snc2 为 His₆ 标签;Sso1 为 His₈ 标签;Sec9 中与 SNAP-25 同源的部分(Sec9c)为 GST 融合蛋白。用 Ni-NTA 或谷胱甘肽琼脂糖纯化,最后换到去垢剂 OG(octylglucoside)中。
- t-SNARE 复合物的重建:把 His₈-Sso1 与 GST-Sec9c 按摩尔比约 1:5 混合,4 °C 过夜形成复合物;加入 POPC:DOPS(85:15)脂膜,用去垢剂稀释 + 透析法形成脂质体;再用**漂浮(flotation)回收脂质体;最后用凝血酶(thrombin)**切掉 GST。约 60–70% 的 GST-Sec9c 朝外、可被切开,其余朝内、抗切割;对照实验证明 GST 不影响 Sec9c 活性。
- v-SNARE 的重建:把候选 v-SNARE 单独重建进含荧光脂质的"供体"脂质体,用同样方法回收。
- 融合测定(lipid mixing):供体脂质体含 NBD/Rhodamine 荧光脂质,与不带荧光的"受体"脂质体按 1:9 混合于 96 孔板,37 °C 实时读取 NBD 荧光(激发 460 nm,发射 538 nm),每 2 min 一点。120 min 时加入去垢剂(n-dodecylmaltoside)测定"无限稀释"荧光作为 100% 定标。数据换算成 rounds of fusion(融合轮数),即脂质被稀释的倍数。
- 阴性/抑制对照:加入可溶的 v-SNARE 胞质域(GST-Snc2ΔTMD)竞争,检验融合是否真依赖 SNARE 配对;另设无蛋白脂质体作为背景。
- 定量:Coomassie 染色胶 + 已知量标准品估算蛋白量;用 ³H-DPPC 示踪剂测磷脂量;据此计算每个 45 nm 囊泡上 v-/t-SNARE 的拷贝数(Table 1、Table 2)。
- 锚定方式的改造(关键实验):Ykt6 天然靠 C 端的 CAAX box 接一个 C20 异戊二烯(geranylgeranyl)脂锚;作者另外做了两个版本:接合成 C55 异戊二烯的版本,以及把 Ykt6 胞质域接到 Gos1 跨膜段上的嵌合蛋白版本。
- 文库扫描:11 个候选 v-SNARE × 3 个 t-SNARE 复合物 = 33 个组合全部测定,每个组合的融合程度以对应的 cognate 配对(100%)归一化。
主要结果
1. 酵母质膜 SNARE 在脂质体上就能融合,且依赖 SNARE 配对
酵母质膜的 t-SNARE 是 syntaxin Sso1 与 SNAP-25 同源物 Sec9 组成的异二聚体;它的 cognate v-SNARE 是 Snc2(与 Snc1 遗传上可互换)。Sso1 与大鼠 Syntaxin1A 有 42% 序列一致,Snc2 与神经元 VAMP2 有 50% 一致,说明这套配对在进化上高度保守。
实验上:
- Snc2 供体脂质体与 Sso1/Sec9c 受体脂质体自发且高效融合;
- 把 Snc2 的拷贝数依次降到 0.5×、0.25×,融合速率随之下降(剂量依赖);
- 加入可溶的 Snc2 胞质域竞争,融合被抑制——证明融合确实需要 SNARE 复合物装配,而不是脂质体随机粘连。
2. 酵母与神经元的 SNARE 可以交叉融合
含神经元 v-SNARE VAMP2 的脂质体能和 Sso1/Sec9c 脂质体融合;含神经元 t-SNARE syntaxin1A/SNAP25 的脂质体也能和 Snc2 脂质体融合。速率比各自的 cognate 慢,但明确成立。说明质膜 SNARE 的配对规则在进化中高度保守。
3. 3×3 小矩阵:三个已知配对都融合,六个错配里只有一个融合
当时已被功能鉴定出的 cognate 配对共有三对:
| v-SNARE | t-SNARE | 通路 |
|---|---|---|
| Bet1 | Sed5/Bos1,Sec22 | ER → 高尔基 |
| Nyv1 | Vam3/Vam7,Vti1 | 液泡同型融合 |
| Snc2 | Sso1/Sec9c | 高尔基 → 质膜(本文建立) |
作者把这 3 个 v-SNARE 与 3 个 t-SNARE 做了 9 个组合(Fig. 3):三个 cognate 全部融合;6 个错配中只有 1 个融合——Nyv1 + 质膜 t-SNARE。作者指出,这一组合在动物细胞中对应"溶酶体分泌(lysosomal secretion)“这一普遍存在的通路(在酵母中尚未被证实),因此它很可能是另一个生理上真实的 cognate 配对,而不能简单当作非特异噪声。
4. 全基因组扫描(核心结果):33 个组合里只有 6 个能融合
酵母基因组共编码 14 个非 syntaxin 的 SNARE。其中 3 个(Vam7、Sec9、Spo20)没有跨膜锚定、不是内在膜蛋白,不能单独当 v-SNARE,但可以当 t-SNARE 的"轻链”。剩下 11 个才是真正"候选 v-SNARE":Snc1、Snc2、Bet1、Nyv1、Ykt6、Sec22、Bos1、Gos1、Sft1、Tlg1、Vti1。
把这 11 个分别重建进供体脂质体,与 3 个 t-SNARE 脂质体做 33 个组合(Fig. 4):
| t-SNARE(区室) | 能融合的 v-SNARE | 数目 |
|---|---|---|
| Sed5/Bos1,Sec22(高尔基) | Bet1(唯一) | 1 |
| Vam3/Vam7,Vti1(液泡) | Nyv1(唯一) | 1 |
| Sso1/Sec9c(质膜) | Snc1、Snc2、Nyv1、Sec22 | 4 |
| 合计 | 33 个中 6 个 | 6 |
两个结论:
- 高尔基和液泡的 t-SNARE 极其严格,只认自己那一个 v-SNARE;
- 质膜 t-SNARE 相对"宽松",除了两个 cognate(Snc1、Snc2)外还接受 Nyv1 和 Sec22。作者对此并不回避,而是把这两例都做了解释(见下)。
5. “R 残基"并不是特异性的决定因素
能通过质膜 t-SNARE 融合的 4 个 v-SNARE(Snc1、Snc2、Nyv1、Sec22)都属于 R-SNARE——它们的 SNARE motif 中央(0 层)是一个保守的精氨酸。领域内曾流行"这个 R 决定配对特异性"的观点。但作者指出:这个 R 被突变后并不显著影响分泌,因此它既不可能是融合机制的关键,也不可能是膜间配对特异性的关键。这是主动推翻自己领域一个流行解释的做法。
6. Ykt6:细胞用一个"脂锚"就把候选 v-SNARE 关掉了
Ykt6 是酵母中第 5 个 R-SNARE。它天然通过 C 端 CAAX box 接一个 C20 geranylgeranyl 脂锚。实验发现:
- 天然 C20 脂锚定的 Ykt6:不能融合;
- 换成 C55 异戊二烯锚定:能融合;
- 换成 Gos1 的跨膜肽段(蛋白锚定,和其他 R-SNARE 一样):能融合。
也就是说,Ykt6 的胞质域本身具备当 v-SNARE 的能力,是"脂锚定"这一种锚定方式把它限制住了。这在功能上间接提高了质膜 t-SNARE 的"有效特异性”。
7. 作者的机制解释:为什么"溶液里能配对"不等于"膜间能融合"
当时有两项用可溶性 SNARE(无膜锚定)研究特异性的工作得出了相反结论:SNARE 配对似乎没有内在特异性。本文的反驳是方法学的:
- 可溶性 SNARE 的结合实验缺少膜锚定,也缺少直接的功能读出;
- 融合是一个能量耦合过程:SNAREpin 装配释放的自由能,有一部分被用来对脂双层做功(把两层膜拉近、弯曲、破膜),这相应地降低了 SNAREpin 本身的稳定性;
- 因此,一个在溶液里"热力学上很有利"的非 cognate 配对,如果其自由能不足以完成对膜做的功,在膜与膜之间就不会发生。膜锚定把"装配"和"做功"耦合起来,这本身就提高了选择性。
结论与意义
- 区室特异性在很大程度上内在于 SNARE 蛋白的物理化学性质。把 SNARE 从细胞中分离出来、只放在两个脂质体之间,细胞内的膜流地图几乎被忠实重演(“almost without exception”),这正是 SNARE 假说的预言。
- 特异性不是绝对的,但方向是对的。33 个组合中只有 6 个融合,且 4 个是已知的生理配对;高尔基和液泡的 t-SNARE 严格专一,质膜 t-SNARE 只是"不严格"而非"乱配"。
- 特异性由三个层次共同保证,本文只证明了第三层。作者明确写道:SNARE 的内在特异性虽然已经把膜流限制得很死,但仍然被定位(topogenic signals)和调控(Rab、tether、局部激活)所"加固(buttressed)"。
- 锚定方式(anchor)是特异性的一部分。Ykt6 的例子说明,同一个胞质域,换一种膜锚定方式,功能就从"不能当 v-SNARE"变成"能当 v-SNARE"。这提示我们在讨论 SNARE 特异性时不能只看 SNARE motif,还要看它怎么被固定在膜上。
- 方法学教训:判断 SNARE 特异性必须用有膜锚定的、有功能读出(融合)的体系;用可溶性蛋白的体外结合数据推断膜间特异性是不可靠的。
- 对领域的定位:SNARE 提供的是"进化上保守、通常静态"的区室身份编码;Rab 和 tether 提供的是"动态、可调"的空间与时间控制。两者是互补而非冗余的关系。
我的思考
这篇文章的结论很强,但也有其他值得探讨的点。
作者证明的是"充分性"——孤立的 SNARE 就足以重现特异的融合模式。但没有证明"必要性"——在体内,特异性是不是只能由 SNARE 决定。这两件事在逻辑上是分开的。如果要补上必要性,我想最直接的实验是体内 domain swap:把 Bet1 的 SNARE motif 换到 Snc2 的定位信号 + 锚定上,看这个"伪装成 Snc2 的 Bet1"会不会把本应去高尔基的囊泡错误地送到质膜。如果会,就说明 SNARE motif 确实是"邮政编码";如果不会,说明定位信号的分量比本文暗示的更重。这个实验在 2000 年的技术条件下并不难,作者没做,可能是因为他们已经把"体外重现"当成了更强的证据。
第二个让我在意的地方是读出方式。本文的"融合"只有脂质混合(NBD 去淬灭)。脂质混合可以停在半融合(hemifusion)——两层膜的外叶连通了,内叶和内容物还没通。内容物混合的证据在本文里是引用前人的(ref. 6),不是自己做的。所以严格讲,本文测的是"SNARE 依赖的膜间脂质连通"。这并不是说结论错了(这个领域的惯例如此,而且后续工作确实补上了内容物混合),但值得进一步探究。
第三个是定量上的不对称。Table 1 和 Table 2 里各囊泡的蛋白拷贝数差异很大:最少的液泡 t-SNARE 只有 14 拷贝/囊泡,最多的 Sft1 有 1111 拷贝/囊泡。作者说——“cognate 的密度不高于其他候选,这个方向有利于检出假阳性而不是假阴性”。但它只能排除"假阳性",不能排除"假阴性":某些"不融合"可能只是密度太低。要真正扎实,需要做"融合速率 vs 表面密度"的滴定曲线,然后外推到同一密度再比较。另外,Snc2 用 Coomassie 染色很差,作者自己也承认它的定量不准。
第四个是锚定。Ykt6 的实验是全文最漂亮的一个发现:同一个蛋白,C20 脂锚不融合,C55 脂锚和跨膜段就融合。但"为什么"完全没有回答。我的猜测是:C20 这种短链、双脂锚的结构过于"浅"和"灵活",在 trans-SNARE 复合物把两层膜往一起拉的时候,它无法提供足够的锚定深度和机械阻力,于是能量被"浪费"在把脂锚从膜里拽出来,而不是用在弯曲膜上。另一种可能是 C20 版本的重建效率低,表面密度本来就不够——这需要用等密度的对照来排除。不管哪种解释,这都提示"锚定"不是被动的固定装置,而是融合机器的一部分。这是一个可以做的假设。
最后一个:这篇文章的 33 个组合里,有 27 个是"不融合"的负结果,而负结果恰恰是它最有价值的部分。但负结果的解释力完全依赖于"不融合 = 不配对"这个隐含假设。作者在讨论里承认"我们不知道那些不融合的组合是否发生无效停靠",并且引用自己以前的工作说"就研究过的情况而言,它们确实不停靠"。这个引用很关键,但也很单薄——如果要用负结果论证特异性,就必须有独立的停靠(docking)读出,比如用荧光标记直接看囊泡是否被拴在平面支撑的双层膜上。
仅为一点想法。
专业词汇表
| 单词 | 音标 | 释义 | 生化医学专业含义 | 解释 |
|---|---|---|---|---|
| SNARE | /sneə(r)/ | 陷阱、套索 | 介导囊泡与靶膜融合的一类膜蛋白家族 | 名称来自 “SNAP receptor”,是 v-SNARE 与 t-SNARE 的统称 |
| v-SNARE | /ˈviː sneə(r)/ | — | 位于囊泡膜上的 SNARE | v 代表 vesicle,多为 R-SNARE(如 VAMP、Snc、Bet1、Nyv1) |
| t-SNARE | /ˈtiː sneə(r)/ | — | 位于靶膜上的 SNARE 复合物 | t 代表 target,通常由 syntaxin + 轻链(SNAP-25 类)组成 |
| syntaxin | /sɪnˈtæksɪn/ | — | t-SNARE 的重链组分,含 N 端调节域 | 酵母质膜为 Sso1,高尔基为 Sed5,液泡为 Vam3 |
| SNAP-25 | /snæp/ | — | t-SNARE 的轻链,无跨膜段,靠棕榈酰化锚定 | 酵母同源物为 Sec9;本文用的是其胞质部分 Sec9c |
| NSF | /ˌen es ˈef/ | — | N-ethylmaleimide-sensitive factor,AAA-ATPase | 用 ATP 水解的能量拆开 cis-SNARE 复合物,为下一轮融合"复位" |
| SNAP | /snæp/ | snap(响指、突然) | soluble NSF attachment protein | NSF 的接头蛋白;SNARE 之名即由此而来 |
| SNAREpin | /ˈsneəpɪn/ | — | 两层膜之间由 v-/t-SNARE 拉成的"针状"四螺旋束 | 融合的最小机器,把两层膜机械地拉到一起 |
| trans-SNARE complex | /trænz/ | trans 意为"跨越" | 跨两层膜的 SNARE 复合物 | 融合前、融合进行中的状态,是"做功"的形式 |
| cis-SNARE complex | /sɪs/ | cis 意为"同侧" | 融合后同处一层膜的 SNARE 复合物 | 融合完成后形成,需 NSF 拆解才能循环使用 |
| R-SNARE | /ɑː(r)/ | — | SNARE motif 0 层为精氨酸的 SNARE | 多为 v-SNARE;本文证明该 R 残基不决定特异性 |
| Q-SNARE | /kjuː/ | — | SNARE motif 0 层为谷氨酰胺的 SNARE | 多为 t-SNARE 组分,与 R-SNARE 互补配对 |
| SNARE motif | /ˈməʊtiːf/ | 基序 | 约 60–70 个氨基酸的七肽重复序列 | 四个 motif 缠绕成四螺旋束,是配对与融合的结构基础 |
| coiled-coil | /kɔɪld kɔɪl/ | 卷曲的螺旋 | 两股以上 α 螺旋缠绕的结构 | SNARE 复合物的核心结构,异常稳定 |
| cognate | /ˈkɒɡneɪt/ | 同源的、同族的 | 生理上正确配对的(v-/t-SNARE) | 本文的核心概念:只有 cognate 配对才高效融合 |
| non-cognate | /nɒn ˈkɒɡneɪt/ | — | 非生理配对的组合 | 本文中 33 个组合里绝大部分属于此类 |
| compartment | /kəmˈpɑːtmənt/ | 隔间、区室 | 细胞内由膜围成的独立空间 | ER、高尔基、液泡、内体、质膜等 |
| compartmental specificity | /kəmˈpɑːtməntl ˌspesɪˈfɪsəti/ | — | 区室特异性 | 囊泡只与"正确"的靶区室融合的性质,本文主题 |
| membrane fusion | /ˈmembreɪn ˈfjuːʒn/ | — | 双层膜合并为单层膜的过程 | 需经历识别、停靠、半融合、孔道开放等阶段 |
| hemifusion | /ˌhemiˈfjuːʒn/ | hemi 意为"半" | 半融合:仅外叶脂质连通,内叶与内容物未通 | 脂质混合实验无法与完全融合区分,是本文读出的边界 |
| docking | /ˈdɒkɪŋ/ | 停靠 | 囊泡被拴在靶膜上但尚未融合的状态 | “不融合"可能只是"不停靠”,也可能"停靠但不融合" |
| tethering | /ˈteðərɪŋ/ | 拴系 | 由长而柔性的蛋白(tether)把囊泡先拉近靶膜 | 发生在 SNARE 配对之前,Rab 参与其中 |
| Rab GTPase | /ræb ˌdʒiː tiː ˈpiː eɪs/ | — | 小 GTP 酶家族,调控囊泡运输的方向与身份 | 只有 GTP 结合态才有活性;与 tether 协同提供时空调控 |
| liposome | /ˈlɪpəsəʊm/ | 脂质体 | 人造磷脂双层囊泡 | 本文的"最小体系":只有脂质和重建进去的蛋白 |
| proteoliposome | /ˌprəʊtiəʊˈlɪpəsəʊm/ | — | 含重建膜蛋白的脂质体 | 本文所有 donor / acceptor 囊泡都是 proteoliposome |
| reconstitution | /ˌriːˌkɒnstɪˈtjuːʃn/ | 重建、重构 | 把纯化蛋白重新组装进脂膜并恢复功能 | 本文核心方法,是"体外最小体系"的前提 |
| lipid mixing | /ˈlɪpɪd ˈmɪksɪŋ/ | — | 脂质混合 | 用荧光去淬灭测两层膜脂质是否连通,本文唯一的功能读出 |
| fluorescence dequenching | /flʊəˈresns ˌdiːˈkwentʃɪŋ/ | quench 意为"淬灭" | 荧光去淬灭 | 荧光脂质被稀释后不再自淬灭,信号上升,用于定量融合 |
| NBD | /ˌen biː ˈdiː/ | — | 7-nitrobenz-2-oxa-1,3-diazole,常用荧光脂质标记 | 激发 460 nm、发射 538 nm,本文的检测波长 |
| rhodamine | /ˈrəʊdəmiːn/ | 罗丹明 | 另一种荧光脂质标记,与 NBD 构成 FRET 对 | 与 NBD 共掺入供体膜,用于去淬灭测定 |
| rounds of fusion | /raʊndz əv ˈfjuːʒn/ | — | 融合轮数 | 以"脂质被稀释的倍数"表示融合程度,比百分比更物理 |
| donor / acceptor vesicle | /ˈdəʊnə(r)/ /əkˈseptə(r)/ | 供体 / 受体 | 带荧光脂质的一方 / 不带荧光的一方 | 二者融合后荧光被稀释,信号上升 |
| octylglucoside (OG) | /ˌɒktɪlˈɡluːkəsaɪd/ | — | 辛基葡萄糖苷,一种温和非离子去垢剂 | 重建时用来把膜蛋白保持在溶液中,透析时被移除 |
| detergent dialysis | /dɪˈtɜːdʒənt daɪˈæləsɪs/ | — | 去垢剂透析法 | 透析去除去垢剂,蛋白随脂质自发形成脂质体 |
| flotation | /fləʊˈteɪʃn/ | 漂浮 | 密度梯度离心使脂质体上浮以纯化 | 把重建好的脂质体与游离蛋白分开 |
| thrombin | /ˈθrɒmbɪn/ | 凝血酶 | 特异性切割凝血酶识别序列的蛋白酶 | 用来切掉 GST 标签,检验蛋白朝向 |
| glutathione S-transferase (GST) | /ˌɡluːtəˈθaɪəʊn es ˈtrænsfəreɪs/ | — | 谷胱甘肽 S-转移酶,常用融合标签 | 便于用谷胱甘肽琼脂糖纯化;也常用来增大蛋白体积做对照 |
| His-tag | /hɪs tæɡ/ | — | 多聚组氨酸标签 | 用 Ni-NTA 亲和纯化;本文 Sso1 用 His₈,Snc 用 His₆ |
| moiety | /ˈmɔɪəti/ | 一半、部分 | 分子中的某一部分/基团 | 本文指 GST 这一"部分"被切除后剩余的蛋白 |
| Coomassie | /ˈkuːməsi/ | — | 考马斯亮蓝,蛋白染色剂 | 用于估算重建后各蛋白的相对量 |
| isoprenoid | /ˌaɪsəʊˈpriːnɔɪd/ | — | 异戊二烯类脂质 | 蛋白质的脂锚定基团,如法尼基(C15)、geranylgeranyl(C20) |
| geranylgeranyl | /ˌdʒerənɪlˈdʒerənɪl/ | — | 牻牛儿基牻牛儿基(C20 异戊二烯基) | Ykt6 天然通过 CAAX box 接上的脂锚 |
| CAAX box | /kɑːks bɒks/ | — | C 端 Cys-X-X-任何氨基酸 的基序 | 异戊二烯化的识别位点;Ykt6 的 Cys76 是锚定位点 |
| prenylation | /ˌpriːnɪˈleɪʃn/ | — | 异戊二烯化(蛋白质的脂修饰) | Ykt6 的功能依赖此修饰,本文用它制造"锚定差异" |
| lipid anchor | /ˈlɪpɪd ˈæŋkə(r)/ | — | 脂锚 | 用共价连接的脂质把蛋白固定在膜上,与跨膜肽段相对 |
| palmitoylation | /ˌpælmɪtɔɪˈleɪʃn/ | — | 棕榈酰化(C16 饱和脂肪酸修饰) | 哺乳动物 SNAP-25 靠它锚定;酵母 Sec9 不需要 |
| transmembrane domain (TMD) | /trænzˈmembreɪn/ | — | 跨膜结构域 | 本文用它替换脂锚,检验"锚定方式"对融合的影响 |
| chimera / chimaeric | /kaɪˈmɪərə/ /kaɪˈmɪərɪk/ | 嵌合体 | 由不同蛋白片段拼接成的融合蛋白 | 本文的 Ykt6–Gos1 TMD 嵌合体 |
| topology | /təˈpɒlədʒi/ | 拓扑 | 蛋白在膜上的朝向与跨膜次数 | 锚定拓扑(在哪一侧、跨几次膜)会影响能否融合 |
| topogenic signal | /ˌtɒpəˈdʒenɪk/ | — | 决定蛋白亚细胞定位的分选信号 | 只能在完整细胞中被"读取",体外无法体现 |
| integral membrane protein | /ˈɪntɪɡrəl/ | — | 整合膜蛋白(内在膜蛋白) | 含跨膜段、与膜紧密结合的蛋白 |
| auto-inhibitory domain | /ˌɔːtəʊ ɪnˈhɪbɪtəri/ | — | 自抑制结构域 | syntaxin 的 N 端可回折封闭自身 SNARE motif,需被移除才高效融合 |
| vacuole | /ˈvækjuəʊl/ | 液泡 | 酵母的液泡,相当于动物细胞的溶酶体 | 其同型融合是本文三条通路之一 |
| homotypic fusion | /ˌhəʊməʊˈtɪpɪk/ | homo 意为"相同" | 同型融合:同类区室之间的融合 | 液泡与液泡的融合,是最简单的融合模型 |
| heterotypic fusion | /ˌhetərəʊˈtɪpɪk/ | hetero 意为"不同" | 异型融合:不同区室之间的融合 | 如囊泡与高尔基、囊泡与质膜 |
| anterograde / retrograde | /ˈæntərəʊɡreɪd/ /ˈretrəʊɡreɪd/ | — | 顺向 / 逆向运输 | 从 ER 向高尔基 / 从高尔基回 ER,本文 Sec22、Bos1 参与两个方向 |
| endosome | /ˈendəsəʊm/ | — | 内体 | 胞吞后的分选站;Tlg1、Tlg2 在此发挥作用 |
| exocytosis | /ˌeksəʊsaɪˈtəʊsɪs/ | exo 意为"向外" | 胞吐 | 囊泡与质膜融合释放内容物,本文的质膜通路 |
| lysosomal secretion | /ˌlaɪsəˈsəʊməl sɪˈkriːʃn/ | — | 溶酶体分泌 | 溶酶体与质膜融合释放内容物;本文用其解释 Nyv1 与质膜 t-SNARE 的融合 |
| sporulation | /ˌspɔːrjuˈleɪʃn/ | — | 孢子形成 | 酵母在营养匮乏时的减数分裂与孢子形成,Spo20 特异表达于此 |
| Saccharomyces cerevisiae | /ˌsækəˈrəʊmaɪsiːz ˌserɪˈvɪsiː/ | — | 酿酒酵母 | 本文的模式生物:基因组已测序、SNARE 已全部注释 |
| protease | /ˈprəʊtieɪz/ | — | 蛋白酶 | 用于检测蛋白朝向(朝外者被消化) |
| background subtraction | /ˈbækɡraʊnd səbˈtrækʃn/ | — | 背景扣除 | 本文用"被抑制的融合反应"或"无蛋白脂质体"作为背景 |
| arginine | /ˈɑːdʒɪniːn/ | 精氨酸 | 带正电的碱性氨基酸 | SNARE 0 层的 R 残基,曾被怀疑决定特异性 |
| mutagenesis | /ˌmjuːtəˈdʒenəsɪs/ | — | 诱变 | 定点突变用于构造 Ykt6(C76S) 等突变体 |
| temporal / spatial control | /ˈtempərəl/ /ˈspeɪʃl/ | — | 时间 / 空间控制 | 本文用来区分 SNARE(静态编码)与 Rab/tether(动态调控) |
图片来自与网络公开资料。